


A C. elegans féreg a tumorkutatás egy fontos szereplője, mind a hatékony prevenciós, mind a sikeres terápiás stratégiák kidolgozásában nagy szerepe van. Nem csoda, hogy számos kutatócsoport, így az ELTE-Embertani Tanszék genetikusai is aktívan dolgoznak e kis állattal. Ősz Fanni vendégírása.
Tumoros megbetegedések napjainkban
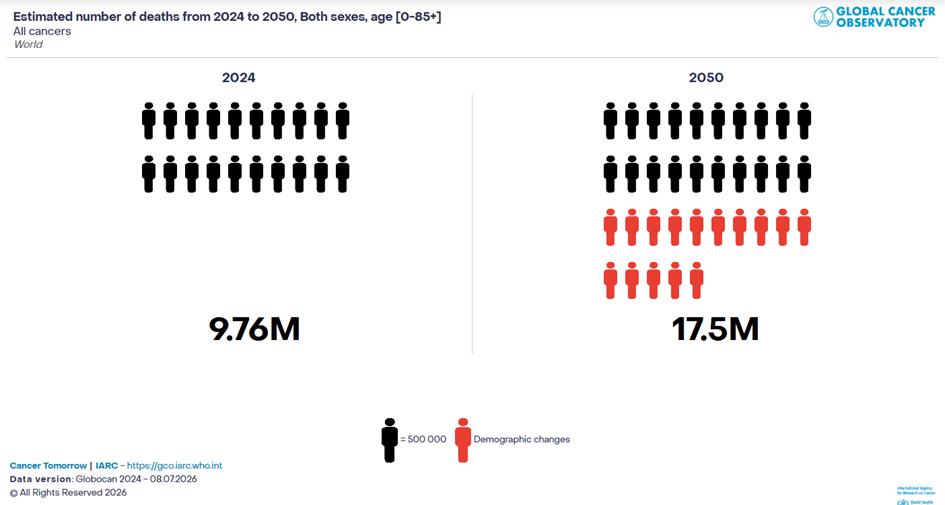
Napjainkban a daganatos megbetegedések a vezető halálokok közé tartoznak: 2024-ben közel 10 millió ember halálát okozták, 2050-re pedig akár a 17,5 milliót is elérheti az elhunytak száma. Tumorok akkor alakulnak ki, amikor a sejtek örökítőanyaga (DNS-e) olyan mutációkat szenved, melyek következtében a sejtosztódás szabályozása megváltozik és a sejtek kontrollálatlanul, gyorsan kezdenek osztódni és növekedni. A DNS károsodásának hátterében számos környezeti tényező is állhat, például a sugárzás (pl. UV-sugárzás), a környezetszennyezés és bizonyos fertőzések (pl. HPV), valamint életmóddal összefüggő tényezők, mint a helytelen táplálkozás, a dohányzás, mozgásszegény életmód is. A tumorok kialakulásának hátterében álló genetikai mutációk rendkívül sokfélék lehetnek, mely megnehezíti a daganatok pontos definiálását és a kezelésükre alkalmazott terápiás módszerek kiválasztását. Még nagyobb problémát jelent a ritka daganatok karakterizálása és gyógymódjaik kialakítása. A kutatások előre lendülésében ezért nagyon fontos szerepet töltenek be a modellállatokkal végzett kísérletek.
A C. elegans, mint genetikai modell
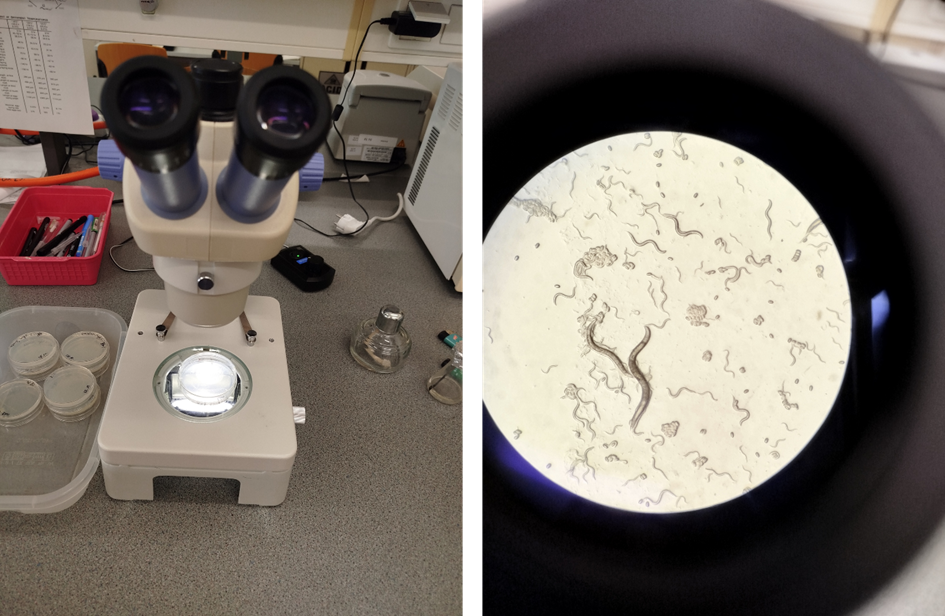
A fonálféreg Caenorhabditis elegans számos olyan tulajdonsággal rendelkezik, melyek előnyös genetikai modellszervezetté teszik. Az állatok életciklusa és élethossza rövid (3,5 nap, illetve 2 hét 16°C-on). Tartásuk olcsó és egyszerű, Petri-csészékbe öntött agarlemezeken tarthatóak, illetve E. coli baktériumot fogyasztanak, melynek szaporítása szintén nem igényel jelentős erőforrásokat. A C. elegans további előnye, hogy -80°C-os fagyasztóban vagy cseppfolyós nitrogénben hosszú távon eltartható, így egyszerre elég azokat a törzseket fenntartani, melyek az aktuálisan végzett kísérletek elvégzéséhez szükségesek. Populációik mintegy 99,8%-át hímnős (hermafrodita) állatok teszik ki, melyek önmegtermékenyítéssel szaporodnak, ezáltal egy-egy törzsben a genetikai információ rendkívül stabil. Egy hermafrodita élete során akár 300 petét is lerakhat, így a különböző vizsgálatokhoz könnyen lehet megfelelő számú állatot biztosítani. A peték, illetve a kikelt állatok is átlátszóak, ezért fény- és fluoreszcens mikroszkóppal intakt formában (azaz boncolás nélkül) is vizsgálhatóak. A felsorolt tulajdonságok mind hozzájárulnak ahhoz, hogy a C. elegans alkalmas legyen potenciális gyógyszerhatóanyagok gyors és nagy mennyiségben történő tesztelésére (szűrésére). Az FDA, azaz az Amerikai Gyógyszerügynökség a C. eleganst 2021-ben hatóanyagok elsődleges szűrésére alkalmas alternatív modellszervezetté nyilvánította.
A fonálféreg C. elegans rákkutatásban betöltött szerepe
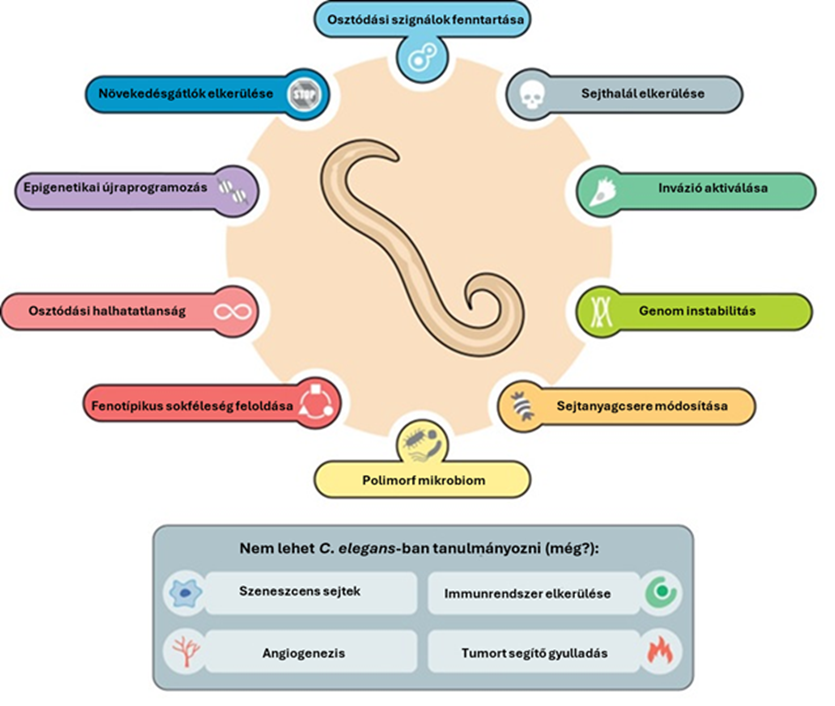
Bár a C. elegans klasszikus értelemben vett tumorokat nem fejleszt, hiperproliferáció – azaz abnormális vagy túlzott mértékű sejtosztódás –a csíravonalban megfigyelhető. Továbbá a daganatos elváltozásokat okozó gének 72%-a megtalálható C. elegansban. A kutatókat már régóta foglalkoztatja az a kérdés, hogy hogyan válnak az egészséges sejtek daganatos sejtekké. A rendelkezésre álló kísérleti eredmények alapján Douglas Hanahan és Robert A. Weinberg munkásságuk során 14 alapvető biológiai sajátságot határoztak meg, melyek elősegítik a daganatok kialakulását és fejlődését. Ezen sajátságok közül 10 a fonálféregben is vizsgálható.
Pheochromocytoma és paraganglioma
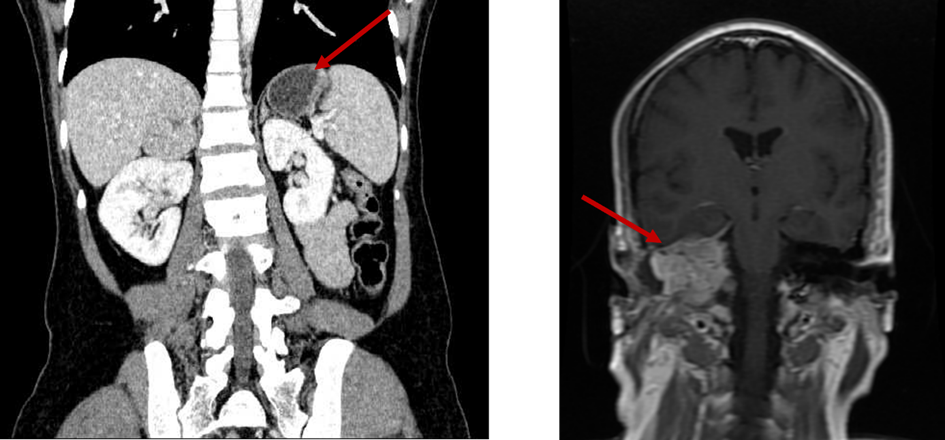
Ritka neuroendokrin daganattípusok a pheochromocytoma, illetve a paraganglioma, melyek rendre a mellékvese velőállományának, illetve a környéki idegrendszer dúcainak rosszindulatú tumoros betegségei. A pheochromocytoma és a paraganglioma hasonló szöveti megjelenésük és a kialakulásuk hátterében álló genetikai mutációk alapján egy csoportba sorolható (közös nevük: PPGL). A PPGL tumorokra jellemző, hogy nagymértékben örökletesek és a többi neuroendokrin tumorhoz hasonlóan hormonokat választanak ki. A PPGL-ek gyakran későn és alul diagnosztizáltak, melynek hátterében az állhat, hogy legtöbbször olyan általános tüneteket okoznak, mint például fejfájás, izzadás, palpitáció. További tüneteik a hormontermelésükkel állnak összefüggésben és periodikusan jelentkeznek. Ilyen tünetek például a túlzottan alacsony vagy magas pulzusszám, a hirtelen kialakuló magas vérnyomás és az infarktus. A betegség diagnosztizálása vérplazmából és vizeletből történhet, melynek során a PPGL tumorokra jellemző hormonok (adrenalin, noradrenalin, dopamin) szintjét vizsgálják. A nem metasztatikus tumorokat műtéttel távolítják el. Metasztatikus daganatok esetén – ha lehetséges – az elsődleges tumort műtét során eltávolítják, majd a beteg kemoterápiás vagy sugárterápiás kezelésben részesül. Ezek a kezelések azonban sajnos legtöbbször palliatívak, illetve nem egyénre szabottak. A modellállatokkal végzett kísérletek azonban segíthetnek abban, hogy PPGL-eket és a hozzájuk hasonlóan ritka daganatos betegségeket a későbbi sikeres gyógyításuk céljából jobban feltérképezzük.
PPGL tumormodell létrehozása és vizsgálata az ELTE Embertani Tanszékén
A PPGL daganatok metabolikus jelenségeit tudjuk egy egyszerű modellorganizmusban, a C. elegansban modellezni és jobban megérteni. Bár a PPGL tumorok hátterében sokféle mutáció állhat, a szukcinát-dehidrogenáz enzim B alegységének (röviden SDHB) öröklött génhibája nagymértékben hajlamosít agresszív, áttéteteket képző daganat kialakulására. A szukcinát-dehidrogenáz egy négy alegységből felépülő enzimkomplex, ami a citromsavciklus (vagy Szentgyörgyi-Krebs ciklus) tagjaként a szukcinát metabolitot fumaráttá alakítja át.
A citromsavciklus a lebontó folyamatoknak egy – a mitokondrium mátrixában zajló – központi folyamata. A mitokondrium belső membránjában elhelyezkedő szukcinát-dehidrogenáz kettős szereppel bír: a citromsavciklusban a szukcinát fumaráttá történő oxidációja során képződő elektronokat a légzési láncba juttatja, melynek II-es komplexét alkotja. Ezek a metabolikus folyamatok evolúciósan konzerváltak, azaz a fonálféregben és az emberben is hasonlóan zajlanak. A légzési lánc komplexeit kódoló gének is erősen konzerváltak. További közös vonása a humán és a féreg mitokondriumoknak, hogy a légzési lánc tagjai úgynevezett szuperkomplexeket alkotnak, mely gyorsabb energiatermelést és stabilabb szerkezetet biztosít számukra. Ráadásul a humán és a C. elegans mitokondriális DNS (mtDNS) között is párhuzam vonható: méretük és szerkezetük hasonló, anyai ágon öröklődnek és poliploidia jellemző rájuk (azaz többszörös génállománnyal rendelkeznek).
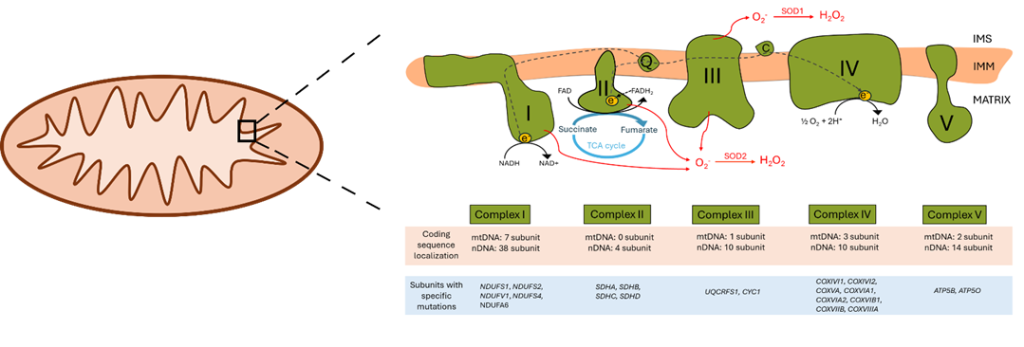
A mitokondrium sematikus szerkezete, illetve a szukcinát-dehidrogenáz elhelyezkedése és szerepe a mitokondrium belső membránjában. (Kép forrása: doi.org/10.3390/antiox14010076 , módosítva)
Az SDHB enzim klinikumban előforduló, Arg230His mutációját modellezzük. Az Arg230His mutáció azt jelenti, hogy egy génhiba miatt az egészséges enzimben 230-as pozícióban megtalálható arginin aminosav hisztidinre cserélődik le. Ez a mutáció C. elegansban 244-es pozícióban van jelen (Arg244His). Az SDHB-1(Arg244His) mutáció eredményeként a modellünkben számos változás következik be. A szukcinát-dehidrogenáz működése sérül, aminek következtében a szukcinát mennyisége megnövekszik a sejtekben. A citromsavciklus nem megfelelő működése miatt a sejtek energiaellátásukat más, alternatív útvonalak segítségével próbálják fedezni, például a glikolízis fokozott működésével. A glikolízis végtermékeként képződő piruvát azonban nem tud a citromsavciklusba belépni, helyette tejsav (laktát) képződik, mely jelenséget Warburg-effektusnak nevezzük. Mivel a szukcinát-dehidrogenáz nemcsak a Szentgyörgyi-Krebs-ciklusban vesz részt, hanem a mitokondriális légzési láncnak is tagja, sérülése a reaktív oxigéngyökök mennyiségének emelkedéséhez vezet. A reaktív oxigéngyökök nagy mennyiségben elősegítik a tumorsejtek fejlődését. Állataink oxigénfogyasztása csökkent, illetve kevesebb mitokondriummal rendelkeznek. Ezen felül az állatok lassabban fejlődnek és felnőtt stádiumban sterilek. A Warburg-effektus, illetve a szukcinát és a reaktív oxigéngyökök szintjének emelkedése mind-mind olyan tulajdonságok, melyek nemcsak a modellünkre, hanem a PPGL tumorokra is jellemzőek. Mindezek fényében, illetve mert modellünk korábban már reagált hatóanyag kezelésre, úgy gondoljuk, hogy PPGL-t célzó gyógyszerjelöltek tesztelésére alkalmas.
A fenti ismertetőben azt szerettem volna bemutatni, hogy egy olyan rendkívül egyszerű modellállat, mint a fonálféreg C. elegans hogyan lehet segítségünkre a PPGL tumorok metabolikus adaptációjának megértésében, illetve a kezelésüket célzó gyógyszerhatóanyagok elsődleges szűrésében.
Források:
wormbook.org
Cerón, J. (2023). Caenorhabditis elegans for research on cancer hallmarks. Disease Models & Mechanisms, 16(6). https://doi.org/10.1242/dmm.050079
Hanahan, D. (2022). Hallmarks of Cancer: New Dimensions. Cancer Discovery, 12(1), 31–46. https://doi.org/10.1158/2159-8290.CD-21-1059
Hanahan, D., & Weinberg, R. A. (2011). Hallmarks of cancer: the next generation. Cell, 144(5), 646–674. https://doi.org/10.1016/j.cell.2011.02.013
Ősz, F., Akbar, M., Zsidó, B. Z., Hetényi, C., Orbán, T. I., Fóthi, Á., Kovács, G. M., Pintye, A., Boda, A., Nazir, A., Farkas, Z., & Takács-Vellai, K. (2025). The Caenorhabditis elegans sdhb-1(R244H) Model Shows Characteristics of Human PPGL Tumor Cells. International Journal of Molecular Sciences, 26(20). https://doi.org/10.3390/ijms262010185
Ősz, F., Nazir, A., Takács-Vellai, K., & Farkas, Z. (2025). Mutations of the Electron Transport Chain Affect Lifespan and ROS Levels in C. elegans. Antioxidants (Basel, Switzerland), 14(1). https://doi.org/10.3390/antiox14010076
Saskői, É., Hujber, Z., Nyırő, G., Likó, I., Mátyási, B., Petővári, G., Mészáros, K., Kovács, A. L., Patthy, L., Supekar, S., Fan, H., Sváb, G., Tretter, L., Sarkar, A., Nazir, A., Sebestyén, A., Patócs, A., Mehta, A., & Takács-Vellai, K. (2020). The SDHB Arg230His mutation causing familial paraganglioma alters glycolysis in a new Caenorhabditis elegans model. Disease Models & Mechanisms, 13(10). https://doi.org/10.1242/DMM.044925
Takács-Vellai, K., Farkas, Z., Ősz, F., & Stewart, G. W. (2021). Model systems in SDHx-related pheochromocytoma/paraganglioma. Cancer Metastasis Reviews, 40(4), 1177–1201. https://doi.org/10.1007/S10555-021-10009-Z